SA 2026|YuelDesign: 一种用于柔性蛋白质口袋分子设计的扩散模型框架
在基于结构的药物设计中,蛋白质通常并非静态不变,配体结合往往会诱导结合口袋发生侧链旋转和局部构象调整。然而,现有多数扩散模型仍将蛋白口袋视为刚性结构,难以充分描述真实的诱导契合过程。近日,一项发表于 Science Advances 的研究提出了柔性口袋分子设计框架 YuelDesign。该方法利用 E3former 同时建模蛋白口袋与配体结构,并结合 EDM 和 D3PM,分别生成连续原子坐标和离散原子类型。结果显示,YuelDesign 不仅能够生成具有良好类药性、较低合成复杂度和较高结构有效性的分子,还能捕捉蛋白侧链重排,形成新的蛋白质–配体相互作用。该工作为将蛋白柔性显式纳入生成式药物设计提供了新的思路。
获取详情及资源:
- 📄 论文: https://doi.org/10.1126/sciadv.aeb7045
- 💻 代码: https://github.com/dokhlab/yuel_design and https://github.com/hust220/yuel_design
0 摘要
针对柔性蛋白口袋进行分子设计,是基于结构的药物发现中的一项重要挑战,因为蛋白质在配体结合过程中往往会发生构象变化。尽管基于深度学习的方法已在分子生成方面展现出良好潜力,但现有方法通常将蛋白口袋视为刚性结构,因此难以充分刻画蛋白质–配体相互作用的动态特征。
该研究提出 YuelDesign,一种联合建模蛋白质–配体复合物中口袋结构与配体构象的扩散模型框架。YuelDesign 采用 E3former,以保持旋转和平移等变性。该框架引入双重扩散过程:针对原子坐标使用显式扩散模型(Elucidated Diffusion Model,EDM),针对配体原子类型使用离散去噪扩散概率模型(Discrete Denoising Diffusion Probabilistic Model,D3PM),从而能够对分子的几何结构与化学组成进行迭代优化。
结果表明,YuelDesign 能够生成具有良好类药性、较低合成复杂度和多样化化学官能团的分子,其对接能量与天然配体相当。总体而言,YuelDesign 为柔性蛋白口袋中的药物分子设计提供了一种具有较强通用性的框架,并展现出良好的药物发现应用潜力。
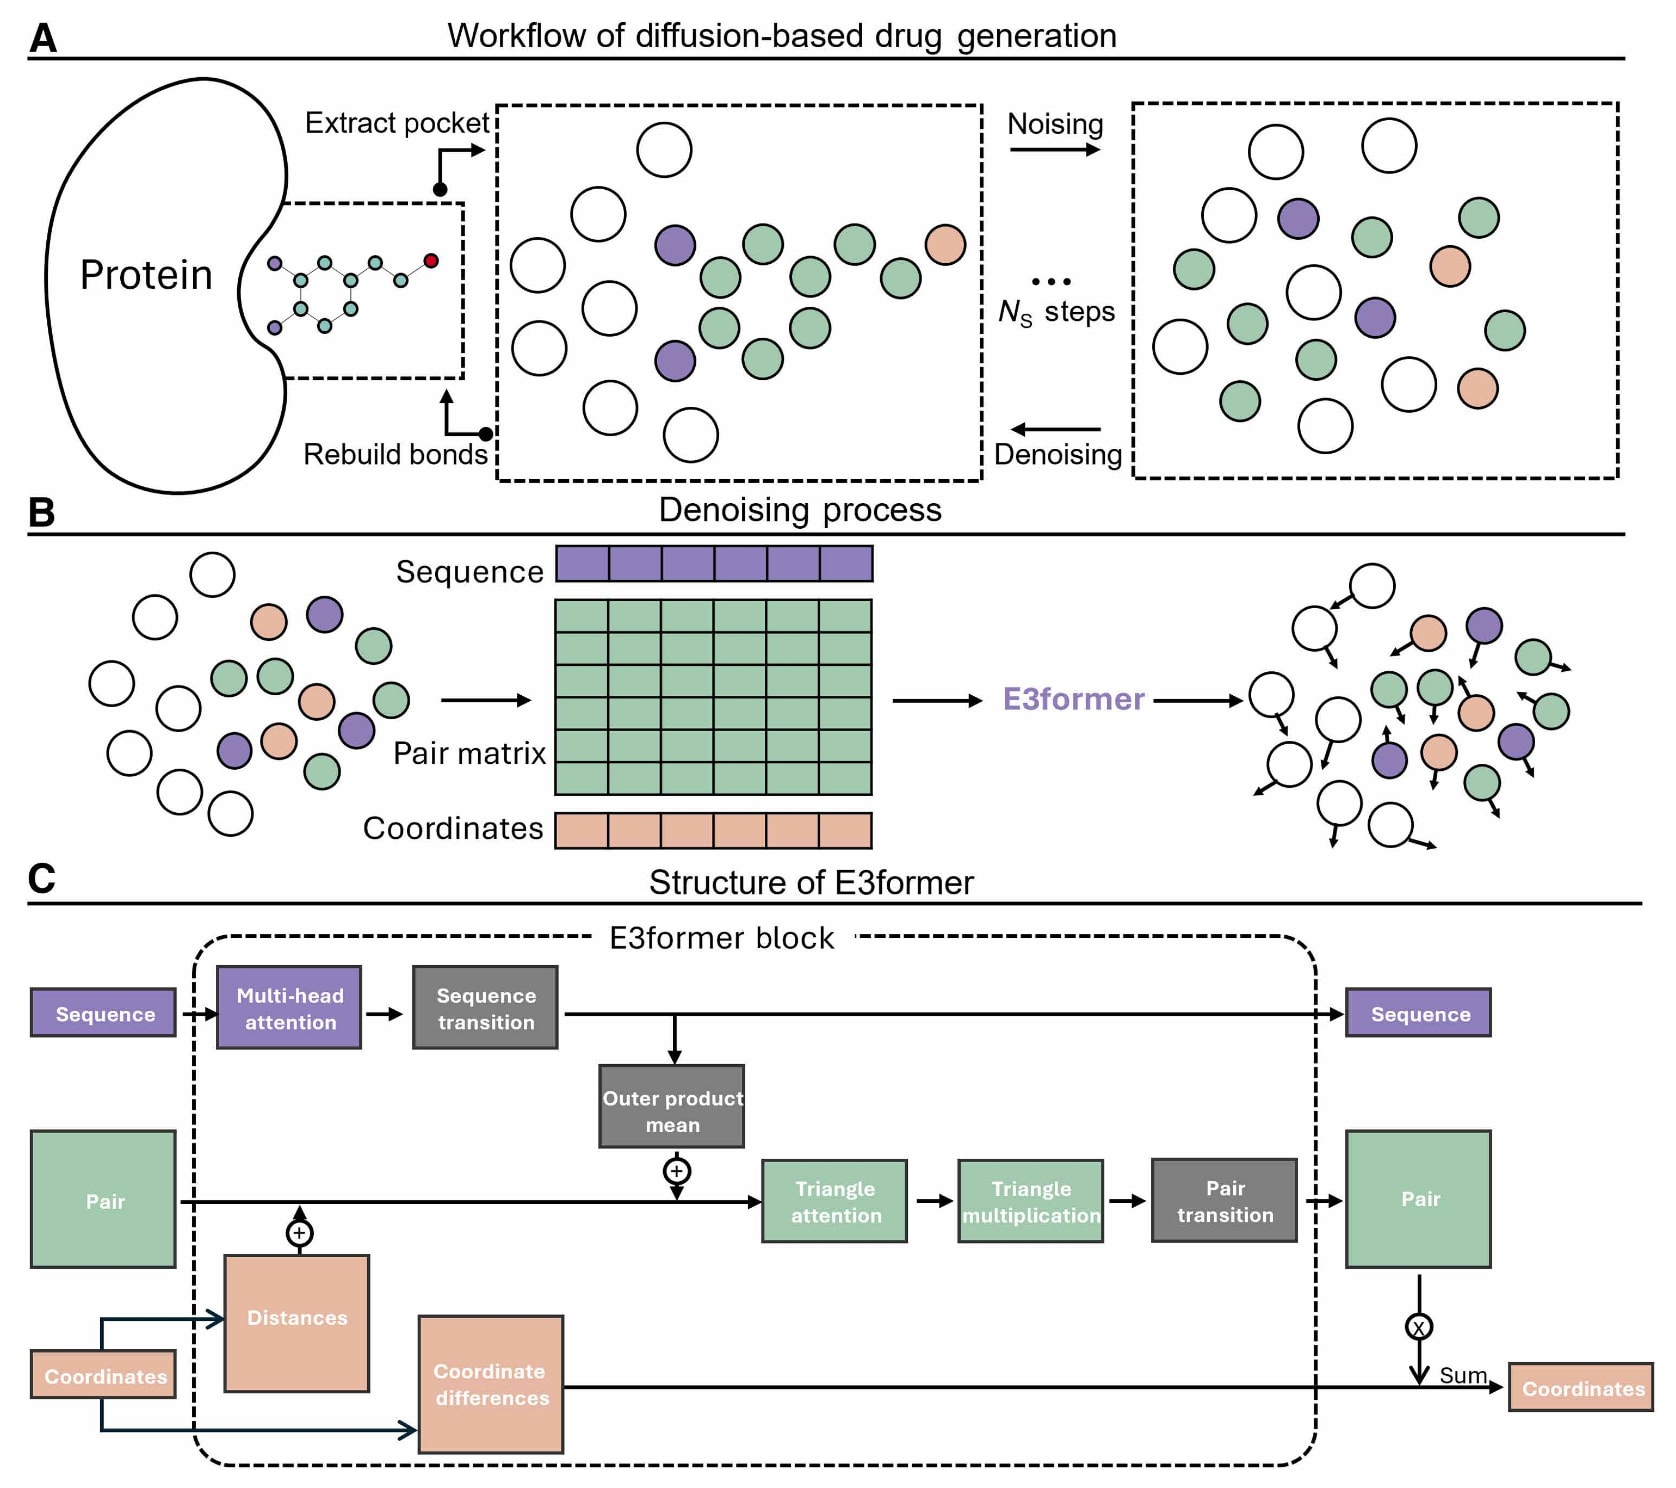
图1|YuelDesign 的工作流程与模型架构。 a,整体流程首先提取蛋白质结合口袋,随后经过
1 引言
设计具有特定性质的三维(3D)分子结构,仍然是药物发现领域的一项基础性挑战。近年来,生成式人工智能技术,尤其是自回归模型和扩散模型,显著推动了从头药物发现的发展,使分子结构能够得到更加高效的生成。现有生成方法大体可分为两类:一类是二维分子拓扑生成,主要构建分子图或 SMILES、SELFIES 等字符串表示;另一类是三维分子构象生成,旨在预测原子在三维空间中的位置。
在二维分子生成领域,常用方法包括自回归模型,例如用于生成 SMILES/SELFIES 的循环神经网络(Recurrent Neural Networks,RNNs);变分自编码器(Variational Autoencoders,VAEs),如 GraphVAE 和 CGVAE;基于生成对抗网络(Generative Adversarial Networks,GANs)的模型,如 MOLGAN;以及基于流的生成框架,如 GraphNVP 和 MoFlow。与此同时,三维分子生成也借助多种新型方法取得了显著进展。例如,DiffSBDD 利用等变图神经网络,在蛋白质结合口袋中生成候选分子,展示了扩散模型在基于结构的药物设计中的应用潜力。其他代表性的扩散生成方法还包括 Pocket based Molecular Diffusion Model(PMDM)、DiffSMol、DiffBP 和 TargetDiff。
然而,在基于结构的分子设计中,如何在生成过程中处理蛋白质结合口袋,是一个关键但尚未得到充分研究的问题。这一问题与蛋白质–配体对接中的刚性对接与柔性对接之分十分相似。刚性对接将结合位点简化为静态结构,而柔性对接允许蛋白质发生构象调整,因此通常能够更准确地预测结合模式和结合亲和力。该现象通常被称为诱导契合(induced fit),即配体结合能够诱导蛋白口袋发生结构重排,从而暴露新的相互作用位点,或改变原有关键相互作用位点。诱导契合还会显著影响结合亲和力预测、虚拟筛选和靶标识别等任务。尽管这一效应十分重要,目前多数分子设计框架仍然很少考虑蛋白口袋的动态特征。例如,DiffSBDD 通常将结合口袋作为刚性结构进行处理。
为解决柔性蛋白口袋中的分子设计问题,该研究提出了基于扩散模型的分子设计框架 YuelDesign(图1)。该框架通过多项关键创新处理蛋白口袋柔性带来的复杂性。首先,YuelDesign 采用全原子表示,在扩散过程中同时生成蛋白质口袋结构和小分子结构。通过这种联合生成方式,可以显式建模蛋白质柔性,使蛋白结构能够在整个生成过程中伴随配体共同发生构象变化。
其次,该研究提出 E3former 架构,并将其作为扩散框架的骨干网络。E3former 基于 AlphaFold 的 Evoformer 架构进行改进,引入三角注意力机制,同时以
第三,YuelDesign 采用混合扩散策略。对于原子类型这类离散变量,使用离散数据去噪扩散概率模型(Denoising Diffusion Probabilistic Models for Discrete Data,D3PM)进行预测;对于连续的原子坐标,则采用显式扩散模型(Elucidated Diffusion Model,EDM)进行生成。E3former 能够同时预测原子类型和原子坐标,其中分别通过 D3PM 和 EDM 完成建模,既保持了原子类型本身的离散性质,又保证了坐标生成过程中的等变性。
该研究从多个维度对 YuelDesign 进行了系统评估。首先,对生成分子的化学性质进行分析,结果表明其具有较高的类药性和较低的合成复杂度。其次,对生成分子的化学多样性进行了评估。再次,对生成的蛋白口袋构象以及蛋白质–配体相互作用进行分析,结果显示 YuelDesign 能够重现合理的口袋构象,并产生新的残基–配体接触。最后,研究进一步详细分析了去噪过程,以揭示模型如何通过原子类型转变、化学键动态变化以及构象调整,对分子结构进行系统性、逐步的优化。
2 结果
2.1 扩散模型生成分子的化学性质分析
该研究对生成分子的化学性质进行了系统评估,并在多项指标上将 YuelDesign 与 DiffSBDD 和 PMDM 进行比较(图2)。评估指标包括定量类药性估计(Quantitative Estimate of Drug-likeness,QED)、Lipinski 五规则(Rule of Five,RO5)符合率、合成可及性评分(Synthetic Accessibility Score,SAS)、大环形成率、化学有效性以及分子连通性。
首先对分子连通性和大环比例进行了评估(图2a)。**连通性(connectivity)**是指一个分子中的所有原子是否能够通过化学键形成单一连通组分。对于基于扩散模型的分子生成方法而言,连通性不足仍然是一个常见问题。这是因为此类模型通常独立预测原子坐标,而没有显式施加化学键约束,因此容易生成由多个片段组成的非连通结构。
大环结构同样是值得关注的指标。该研究将含有超过 6 个原子的环定义为大环。此类结构通常会增加化学合成难度,并可能对分子的类药性质产生不利影响。
在不同分子尺寸下,YuelDesign 均保持了相对较高的连通性,而 PMDM 和 DiffSBDD 的连通性则随着分子尺寸增加而明显下降。这里的分子尺寸定义为化合物中的重原子数量。对于大环结构(环原子数
由于过多的大环结构通常意味着更高的合成难度,并可能削弱类药性质,因此,大环比例呈现出的 YuelDesign < DiffSBDD < PMDM 这一趋势,体现了 YuelDesign 在避免潜在问题结构基序方面的优势。同时,大环比例随分子尺寸增加而上升的趋势也表明,随着分子规模增大,对环结构形成的有效控制将变得更加困难。
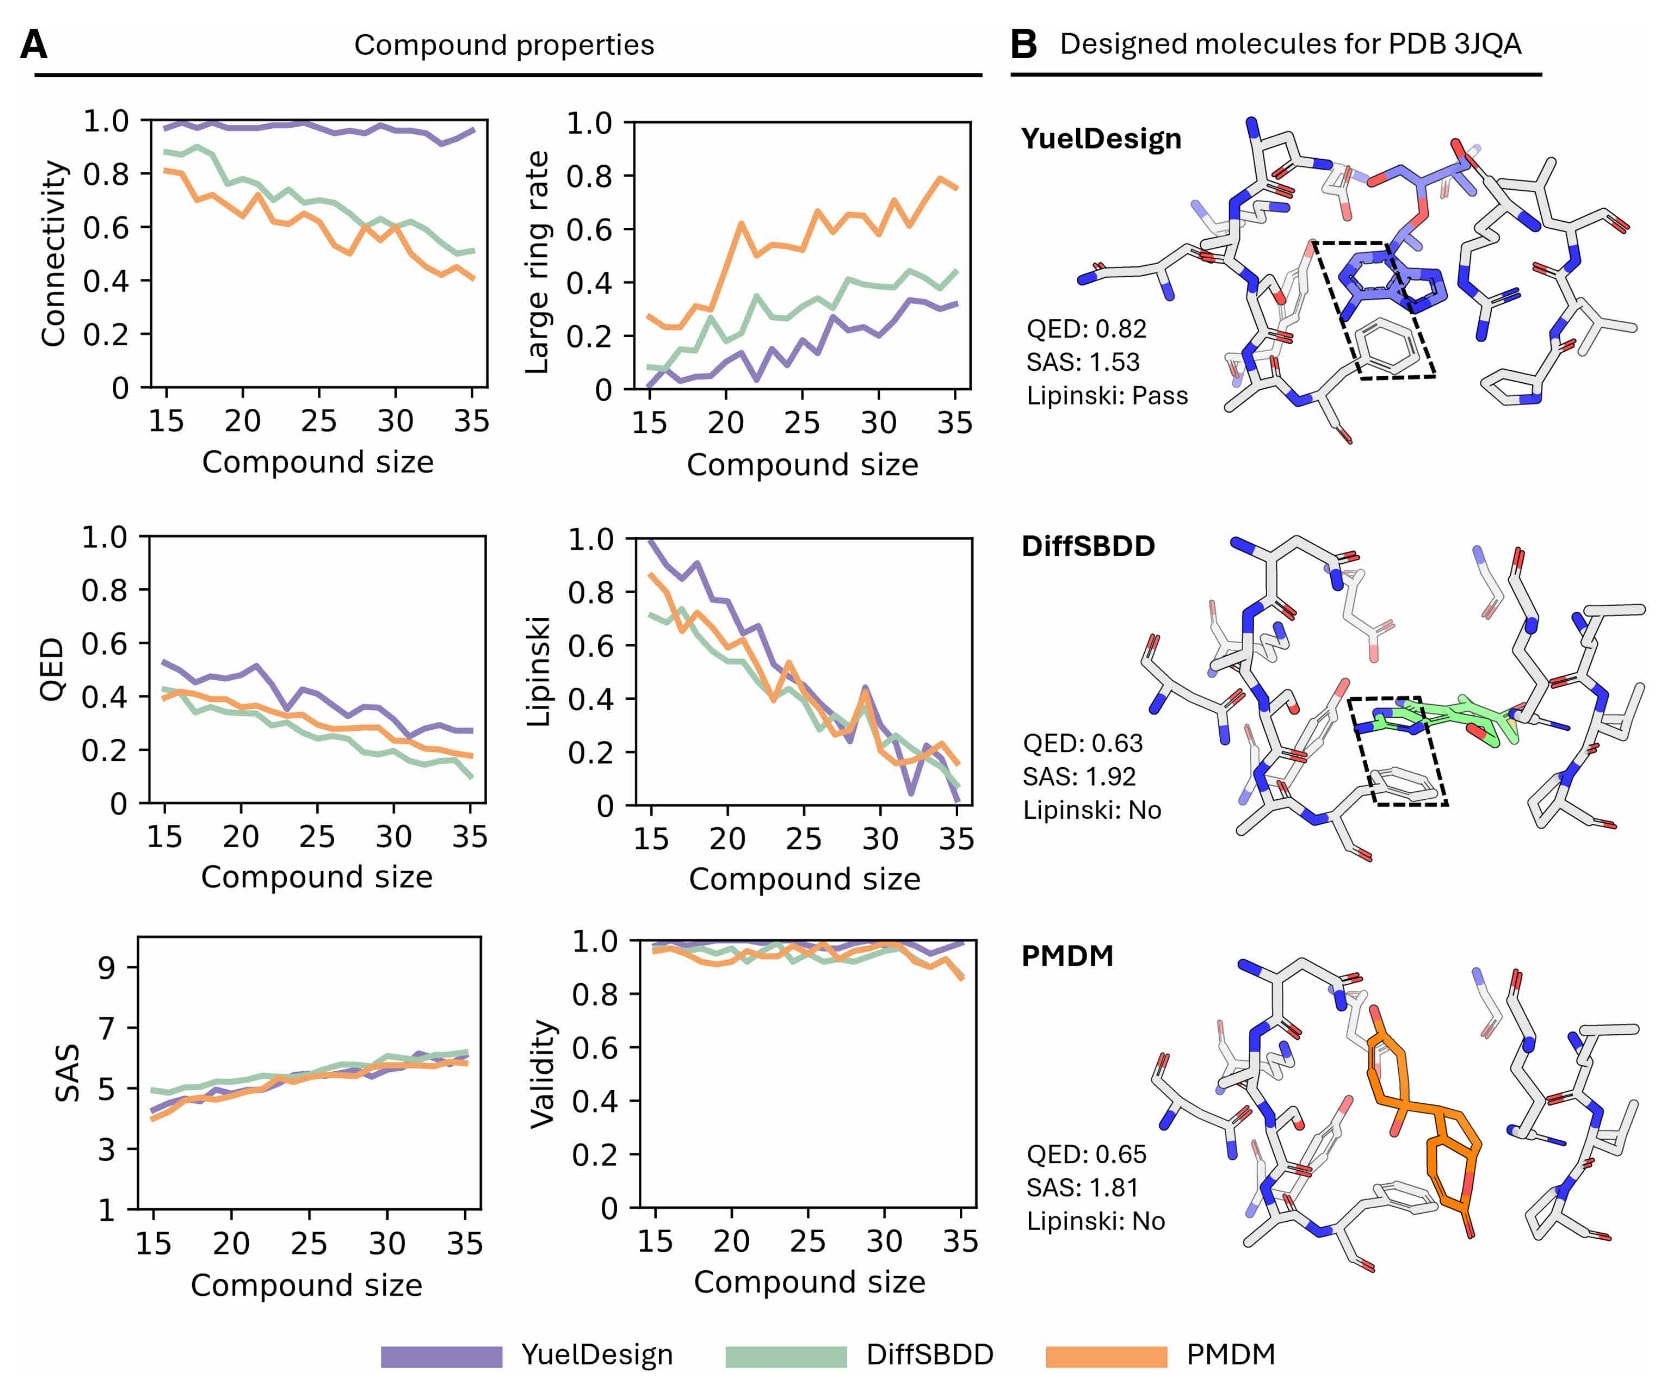
图2|采用多项指标对生成分子进行评估。 a,评估指标包括分子连通性、大环(超过 6 个原子)形成率、定量类药性估计(QED)、Lipinski 五规则(RO5)符合情况(通过/未通过比例)、合成可及性评分(SAS)以及化学有效性。化合物尺寸以重原子数量表示。b,以蝶呤还原酶 1(Pteridine reductase 1,PDB ID:3JQA)为例,对 YuelDesign、DiffSBDD 和 PMDM 设计的分子进行比较。黑框内表示
随后,该研究采用两项广泛使用的指标评估生成分子的类药性:**定量类药性估计(QED)**和 Lipinski 五规则(RO5)。其中,QED 是一个取值范围为 0–1 的综合评分,整合了多种分子描述符;Lipinski 五规则则用于评估与口服生物利用度相关的四项关键理化性质。对于 QED,随着分子尺寸增加,三种模型生成分子的 QED 均呈下降趋势(图2a),但 YuelDesign 在所有分子尺寸范围内的 QED 均持续高于 DiffSBDD 和 PMDM。对于 Lipinski 五规则符合率,YuelDesign 在小分子范围内优于 DiffSBDD 和 PMDM;随着分子尺寸增大,三种模型的 RO5 符合率均明显下降。这一趋势与 Lipinski 五规则本身的设计特点一致,因为 RO5 所评估的理化性质(如分子量)会随原子数增加而增大,因此较大分子天然更容易违反这些判据。
该研究还利用**合成可及性评分(Synthetic Accessibility Score,SAS)**评估生成分子的合成难度。SAS 的取值范围为 1–10,其中 1 表示易于合成,10 表示非常难以合成。该指标综合考虑分子复杂度、罕见结构基序的存在情况以及与已知化合物的相似性。如图2a所示,在不同分子尺寸范围内,三种方法生成分子的 SAS 数值整体较为接近。
最后,对生成分子的化学有效性(validity)**进行了评估。该指标是衡量分子化学可行性的基础指标,用于判断生成结构是否满足基本化学规则和约束。有效性通过 MolVS 进行评估,其中内置的验证器能够识别潜在存在问题的分子结构特征。结果显示,除 PMDM 在分子尺寸为 35 时有效性有所下降外,三种方法在所有分子尺寸范围内的有效率均接近 1.0(图2a)。对于需要经过分子规范化处理的性质分析,包括 QED、Lipinski 五规则和 SAS 等,仅使用**有效且连通的分子进行统计。
YuelDesign 的优势可能来源于其对受体口袋柔性的显式建模能力。例如,如图2b所示,YuelDesign 在诱导蛋白口袋发生构象变化的同时,能够生成具有更高 QED 和更低 SAS 的分子。
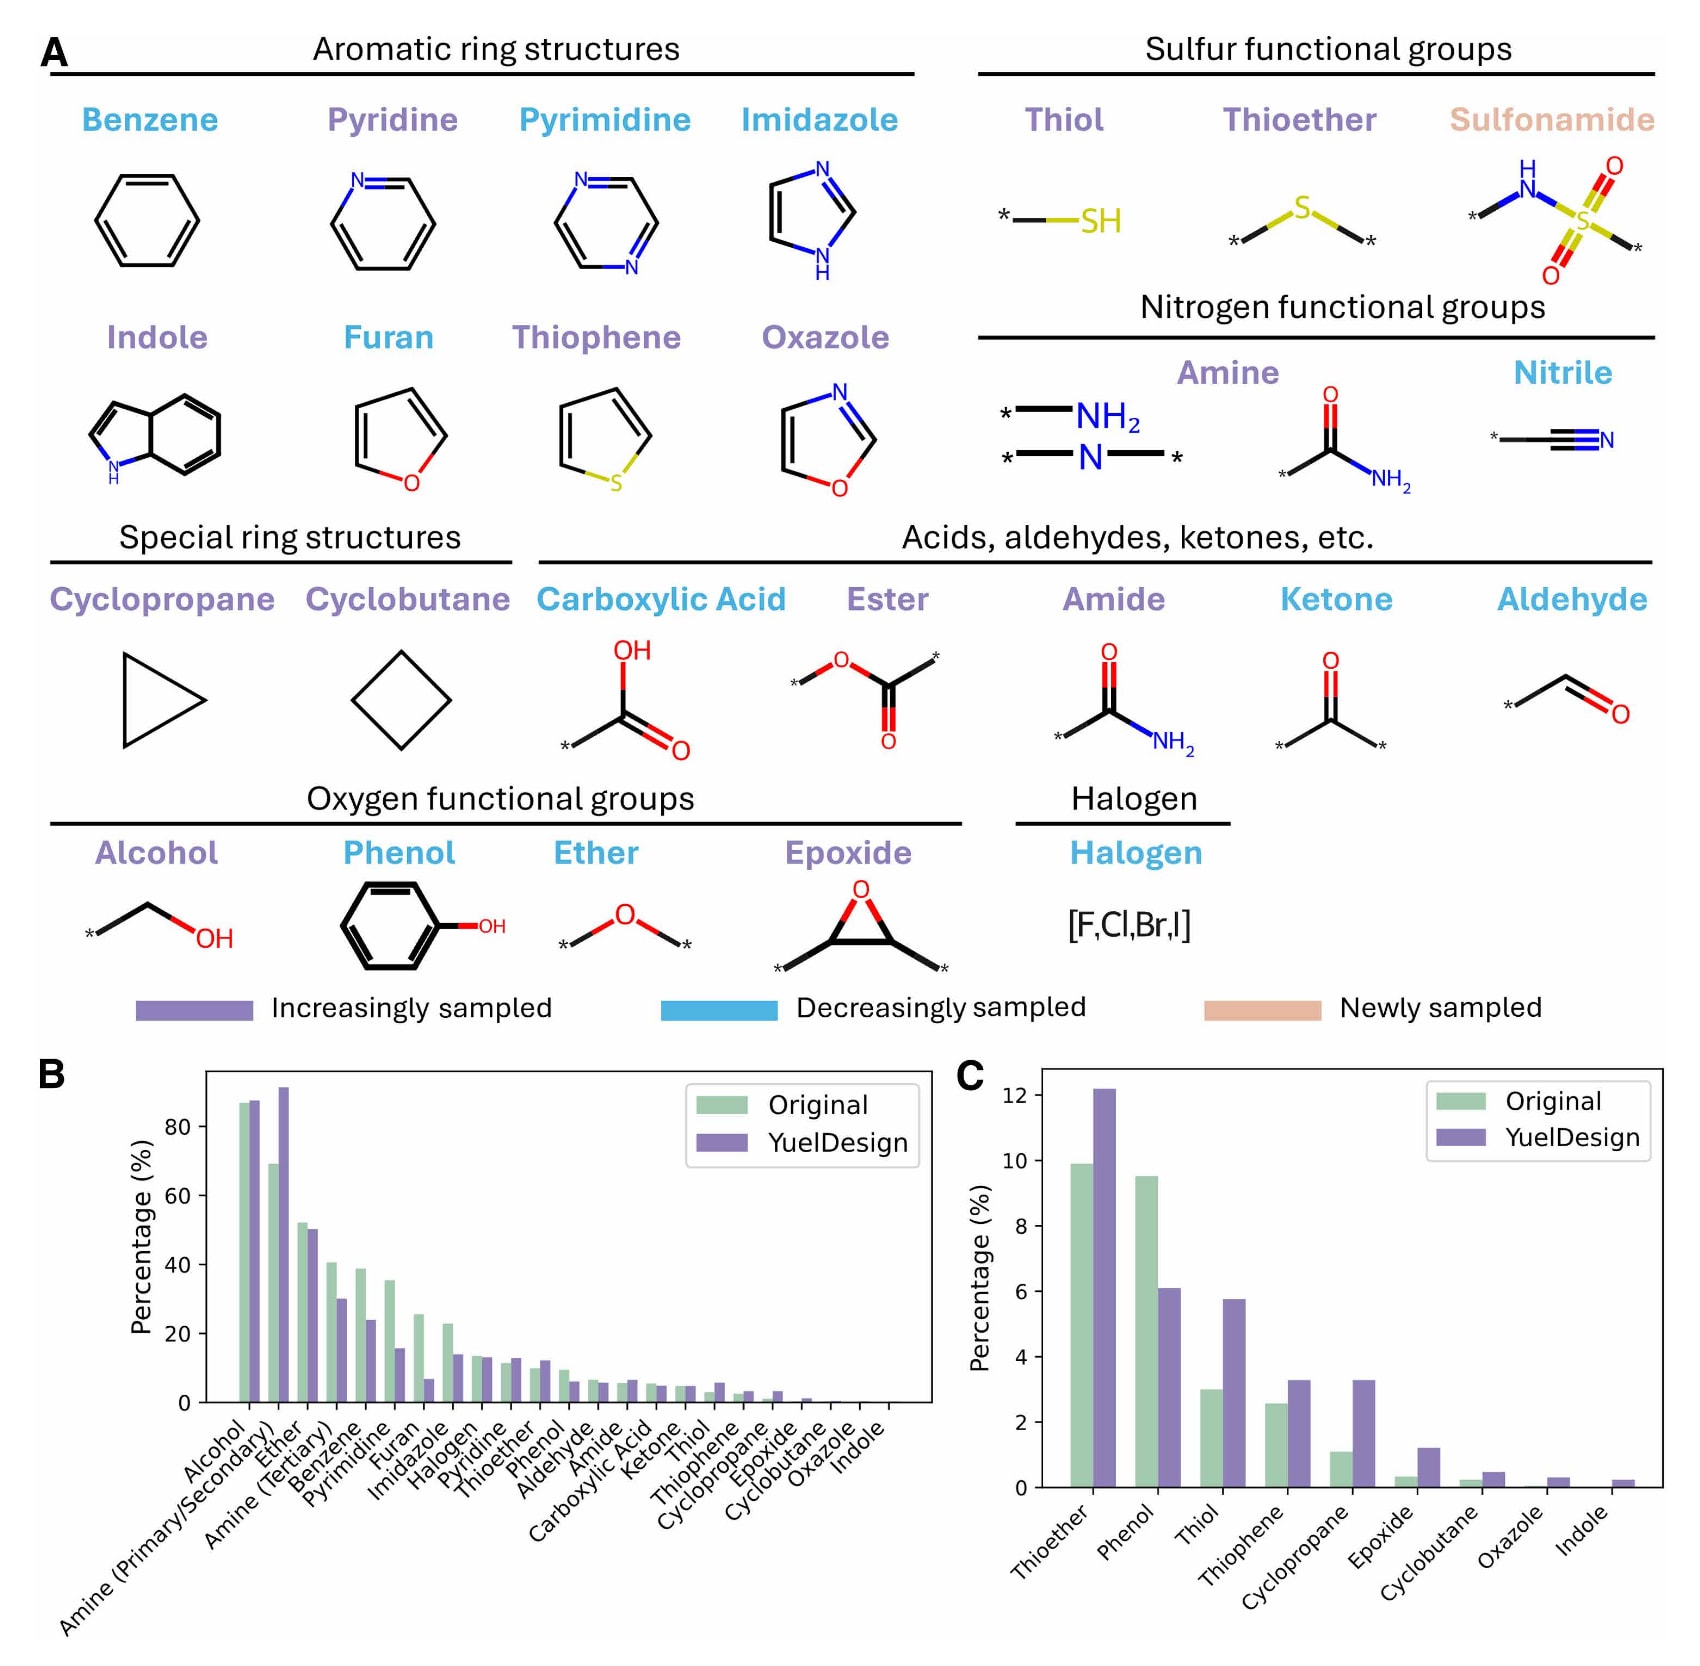
图3|官能团多样性分析。 a,所评估有机官能团的代表性结构,并按照化学类别进行分类,包括芳香环、含氮/硫/氧官能团、卤素等。b、c,柱状图比较天然配体(绿色)与 YuelDesign 生成分子(蓝色)中不同官能团的百分比分布。
2.2 扩散模型生成分子的分子多样性评估
该研究通过比较生成分子与天然配体中各类官能团的频率分布,对其化学多样性进行了系统分析(图3a)。分析涵盖多种结构基序,包括芳香环、特定环系,以及含硫、氮和氧原子的官能团。此外,还评估了常见有机官能团的分布情况,如羧酸、醛、酮、酯、酰胺及其他特定结构基团。
结果显示,生成分子与天然配体在整体官能团分布上具有较高相似性(图3b)。醇羟基是两类分子中最常见的官能团之一,约存在于 85% 的分子中。胺基在天然配体中的出现频率排名第二,而在生成分子中排名第一,分别约占 70% 和 90%。
值得注意的是,小环结构的分布存在一定差异,例如环丙烷、环丁烯和环氧化物(图3c)。尽管这些结构总体出现频率较低,但在生成分子中呈现轻度富集。由于潜在的合成困难以及环张力带来的结构不稳定性,此类小环通常较少出现在类药化合物中。
这一现象反映了扩散生成模型的一项潜在局限:在从高斯噪声逐步生成分子结构的过程中,三元环或四元环相对容易形成,因为这些结构并不一定直接违反键长或键角约束,因此可能导致具有较高环张力的小环结构被过度生成。
2.3 受体结构与蛋白质–配体相互作用分析
由于 YuelDesign 能够同时生成蛋白质口袋和小分子结构,因此该研究进一步评估了生成蛋白质结合口袋的结构质量。通过均方根偏差(RMSD)比较生成口袋与天然口袋,结果显示 RMSD 中位数为 1.8 Å(图4a)。这一数值处于合理范围,因为过高的 RMSD 通常意味着蛋白质侧链构象预测不准确。实际上,蛋白质–配体结合通常只会诱导较小幅度的构象调整,主要表现为侧链旋转,以优化蛋白质与配体之间的相互作用。传统柔性对接方法,如 MedusaDock 和 AutoDock Vina,同样主要通过蛋白质侧链旋转异构体(rotamer)采样来描述这类构象变化。
以蝶呤还原酶 1(Pteridine reductase 1,PTR1;PDB ID:3JQA)的新配体设计为例,相较于 DX4 结合状态下的蛋白构象(图4c),3JQA 中多个侧链在 YuelDesign 生成过程中发生了重新取向(图4b),从而形成额外的极性相互作用,同时保留了原有的
为评估在分子设计过程中显式引入蛋白质结合口袋是否能够改善蛋白质–配体结合能力,该研究分别计算了 AutoDock Vina 评分(图4d)和 MedusaDock 评分(图4e)。结果显示,YuelDesign 生成的分子在两种评分体系中均持续优于另外两种方法。进一步使用 MedusaDock 对设计分子进行重新对接(redocking)(图4f),结果同样表明,YuelDesign 生成配体具有更低的 RMSD,说明其能够获得更加准确的结合构象。
最后,该研究采用 RDKit 分子指纹和 Tanimoto 相似度评估设计分子与原始 DX4 配体之间的结构相似性(图4g)。三种方法生成的配体与 DX4 的整体相似度均较低,反映出在庞大的化学空间中采样得到相似化合物本身具有较高难度。相比之下,YuelDesign 生成分子与 DX4 的相似度略高于另外两种方法。
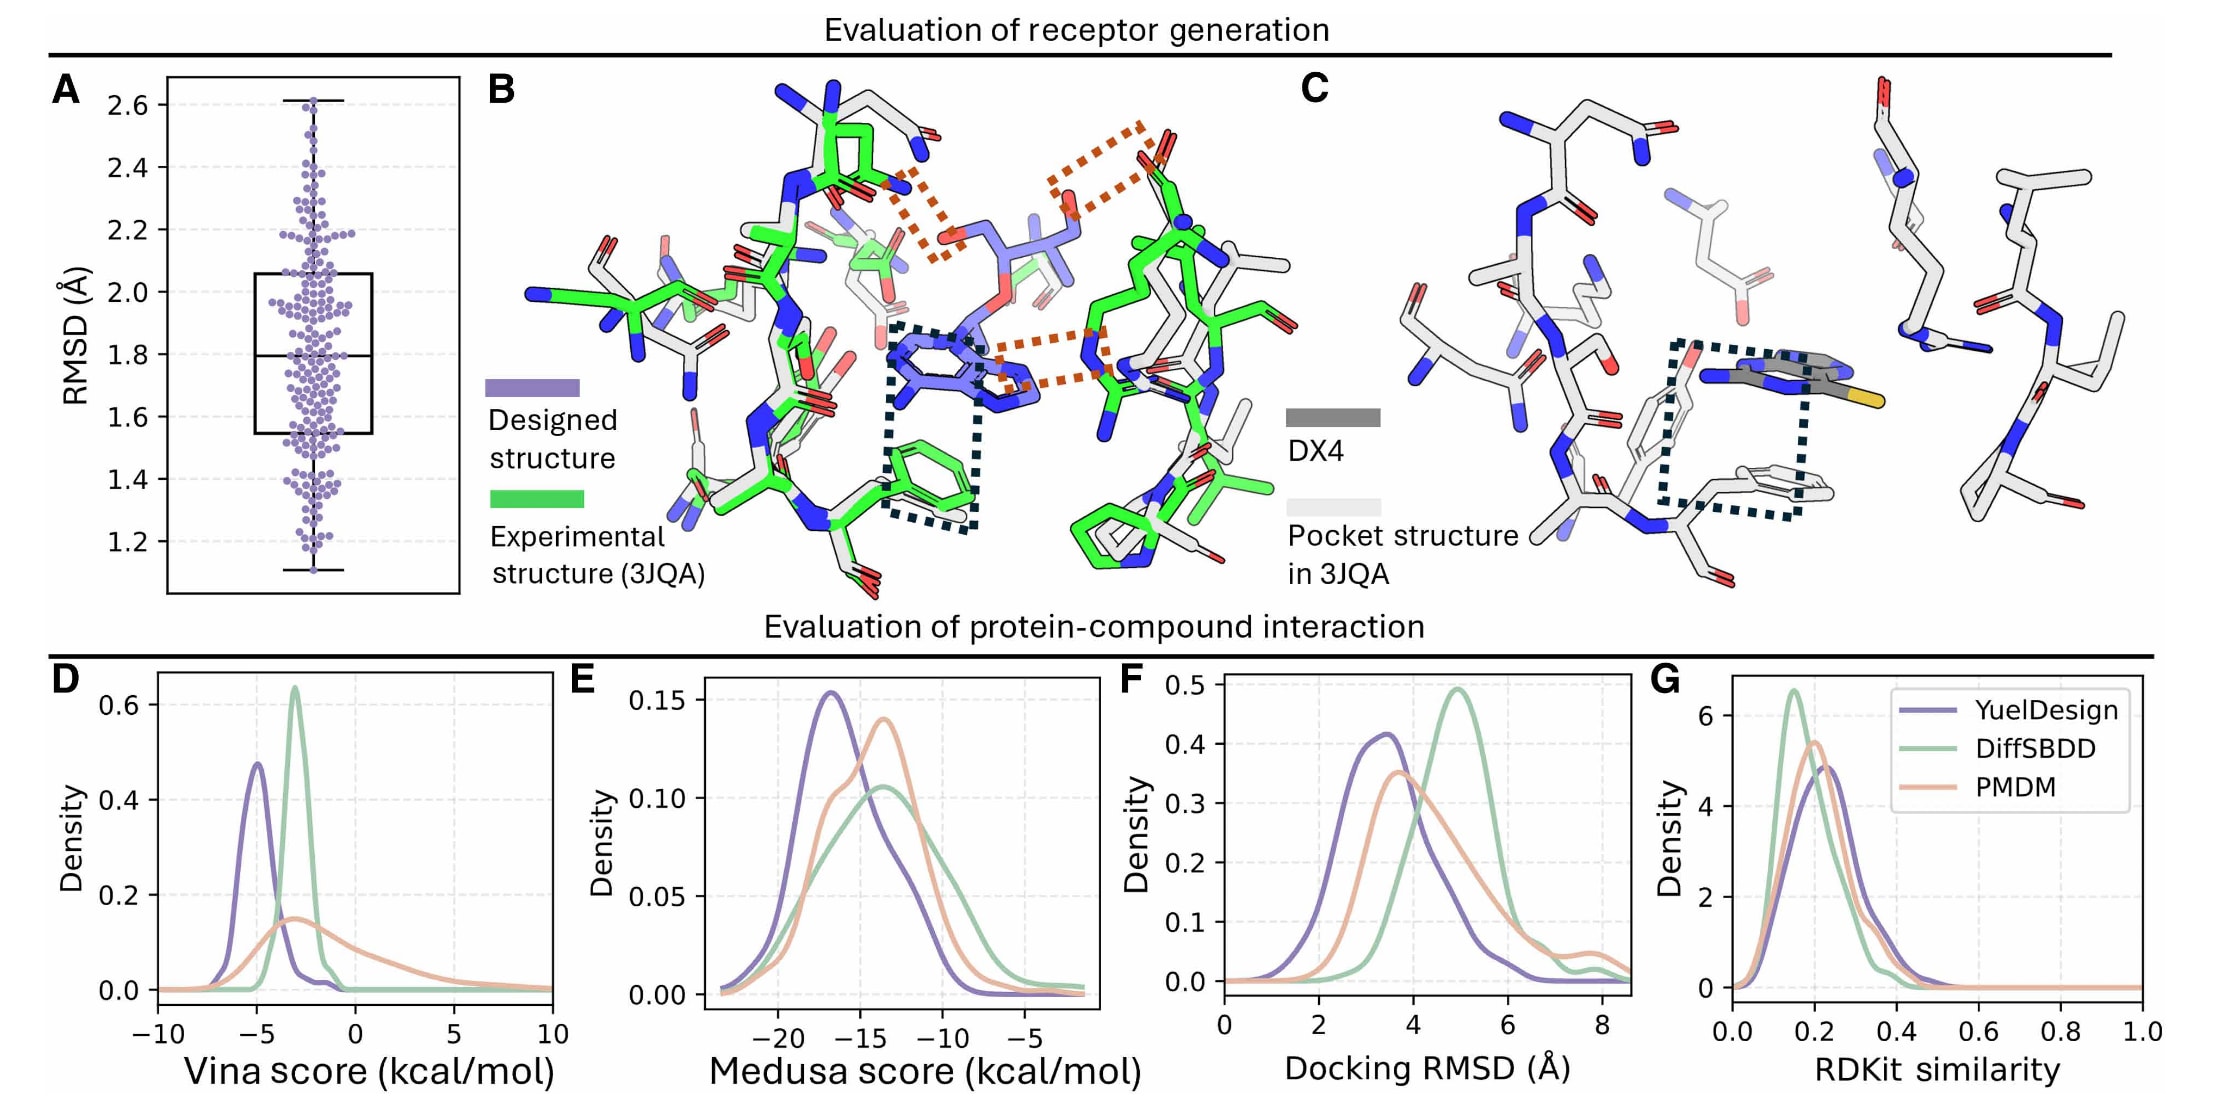
图4|采用多项指标评估受体口袋生成质量及蛋白质–化合物相互作用。 a,生成蛋白口袋结构 RMSD 的分布。b,3JQA 生成口袋结构与实验结构的叠合。黑色虚线框内表示
2.4 蛋白口袋柔性在分子设计中的关键作用
YuelDesign 的核心目标之一,是对蛋白质结合口袋的柔性进行显式建模,从而解决现有扩散生成分子设计方法普遍将结合口袋视为刚性结构这一重要局限。为展示引入口袋柔性对分子设计的影响,该研究选取了**细胞周期蛋白依赖性激酶 2(cyclin-dependent kinase 2,CDK2)**进行针对性分析。CDK2 是一个研究较为充分的蛋白质,其在配体结合过程中会发生明确的构象变化。
CDK2 在未结合状态(PDB ID:4EK3)与配体结合状态之间存在显著的结构转换:在未结合状态下,赖氨酸 33(K33)的 NZ 原子与天冬氨酸 145(D145)的 OD1 原子之间形成盐桥;而在配体结合状态下,这一相互作用会被破坏,从而为配体结合提供空间(图5a)。因此,这一构象转换可作为评估模型能否捕捉蛋白口袋柔性的敏感指标。
值得注意的是,在多个具有活性的 CDK2 复合物中,包括 2FVD(CDK2 与二氨基嘧啶类抑制剂复合物)、1DI8(CDK2 与 4-苯胺基喹唑啉类抑制剂复合物)、1KE8(CDK2 与氧吲哚类抑制剂复合物)以及 1PYE(CDK2 与氨基咪唑并吡啶类抑制剂复合物),D145 与抑制剂之间的相互作用相比未结合状态明显更加有利。D145 经常作为氢键受体与抑制剂形成相互作用,或与配体芳香环形成
首先,该研究评估了生成分子诱导 CDK2 口袋产生类似天然结合状态构象变化的能力。针对每种方法,计算了生成配体与 D145 残基之间的最小距离(图5b)。这是因为,配体与 D145 的近距离接触通常与 K33–D145 盐桥的破坏以及天然活性复合物中有利的配体–D145 相互作用相关。
YuelDesign 生成的分子中,与 D145 最小距离小于 3 Å 的结构比例明显更高。无论统计所有原子,还是仅统计更可能参与极性或离子相互作用的非碳原子,均呈现这一趋势。这表明 YuelDesign 生成的配体能够有效接近并作用于 D145,从而重现天然复合物中的结合模式。相比之下,DiffSBDD 和 PMDM 生成的分子很少能够达到如此近的距离。
为了直接量化蛋白口袋的柔性,该研究进一步测量了生成复合物中 K33 的 NZ 原子与 D145 的 OD1 原子之间的距离(图5c)。由于 DiffSBDD 和 PMDM 不允许蛋白口袋发生构象调整,因此 K33–D145 盐桥无法被有效破坏,也限制了天然活性复合物中所观察到的有利 D145–配体相互作用。
相比之下,YuelDesign 生成复合物中的 K33–D145 距离呈现出较宽的分布范围,其中部分数值与天然配体结合状态中的距离相当,例如 2FVD 中的距离为 2.84 Å。这一结果表明,YuelDesign 能够允许生理相关的盐桥重排,并使 D145 发生相应的构象适应。这种柔性来源于 YuelDesign 对蛋白口袋和配体结构的联合生成,使蛋白侧链重排能够伴随配体结合过程共同演化。
对生成复合物的结构可视化进一步验证了蛋白口袋柔性的重要性(图5d–f)。YuelDesign 生成的配体能够形成与重新取向后的 D145 相互互补的结合构象。相比之下,在采用刚性口袋的方法中,由于固定口袋中的 K33–D145 盐桥始终存在,形成了空间位阻和静电屏障,因此生成配体难以有效接近并与 D145 形成有利相互作用。
总体而言,这些结果表明,蛋白质口袋柔性并非分子设计中的次要结构细节,而是决定分子能否形成有效结合模式的关键因素。
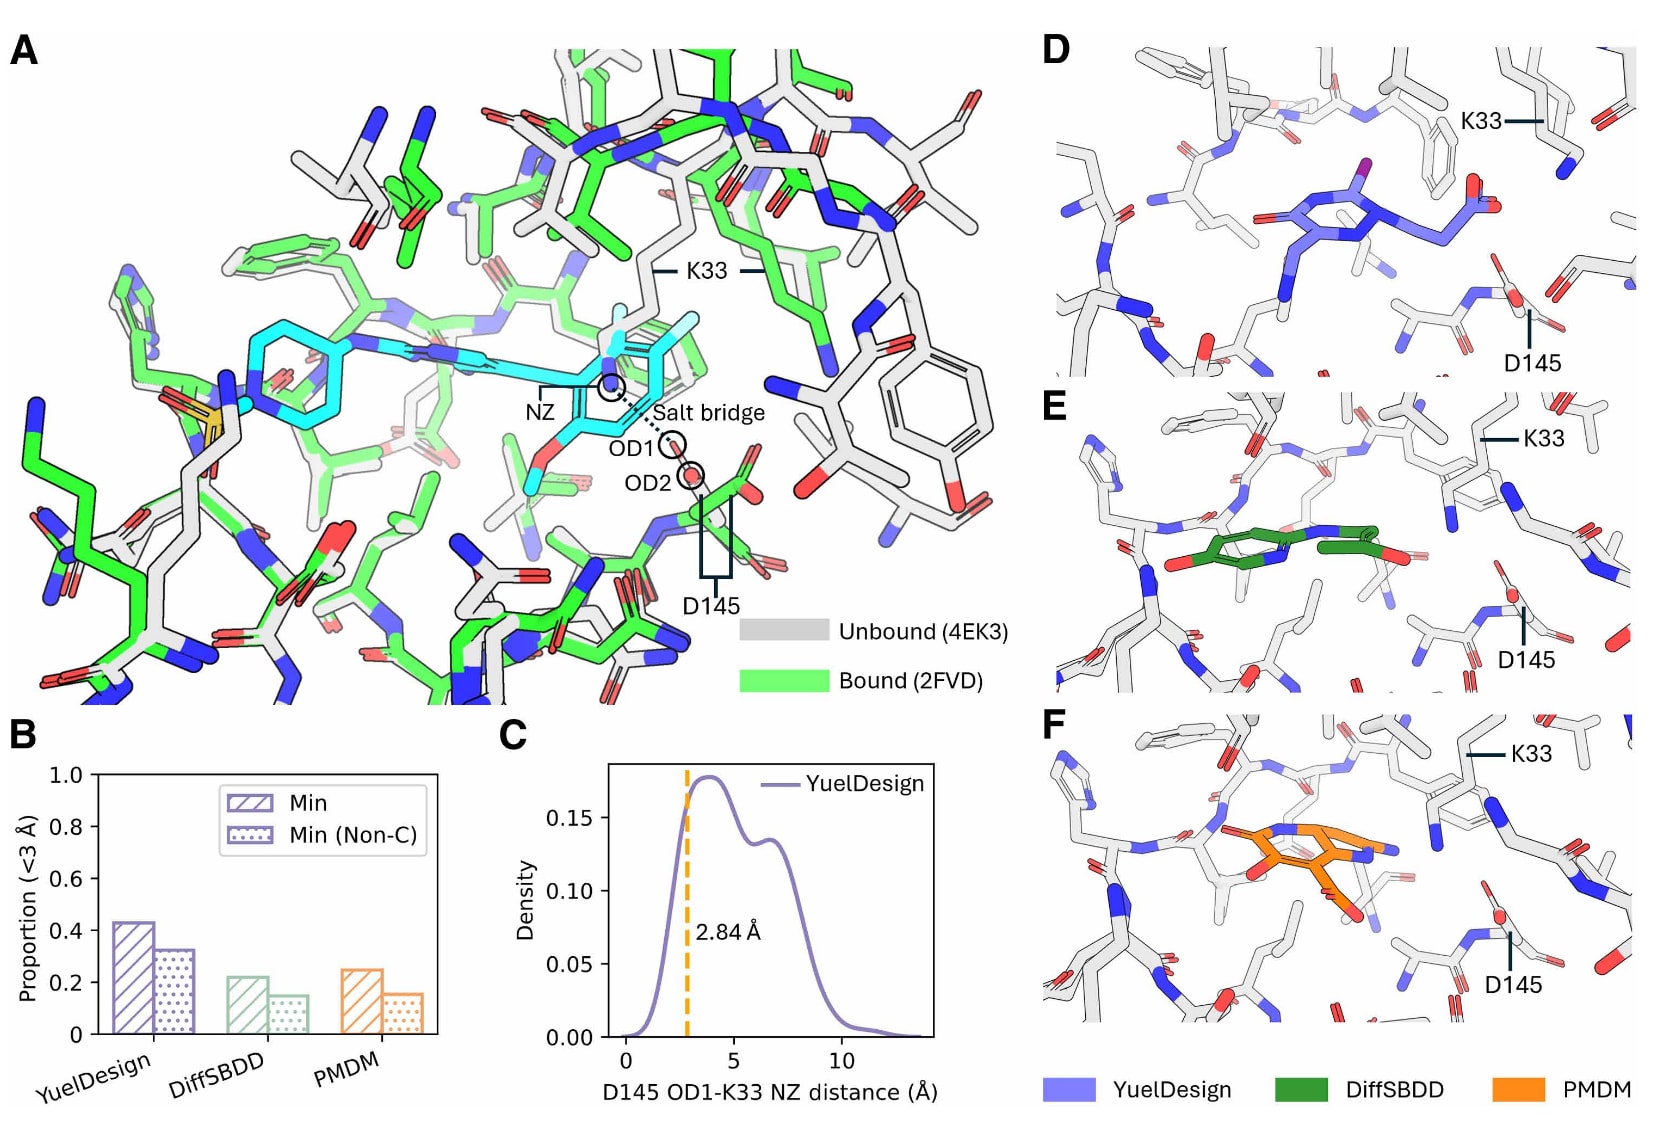
图5|不同方法生成分子与 CDK2 相互作用的评估。 a,未结合状态 CDK2(PDB ID:4EK3)与二氨基嘧啶抑制剂结合状态 CDK2(PDB ID:2FVD)的口袋结构比较。在未结合状态下,K33 的 NZ 原子与 D145 的 OD1 原子之间形成盐桥;在配体结合状态下,该盐桥被破坏。b,评估生成分子与 D145 最小距离小于
2.5 去噪过程中的结构演化
最后,该研究对扩散模型去噪过程中的结构演化进行了详细分析,从原子和分子两个层面考察生成结构的变化(图6)。相关分析仍以蝶呤还原酶体系为例,主要包括原子类型转变、结构稳定性、化学键动态变化以及整体构象演化。
原子类型演化分析展示了不同原子在去噪过程中的变化轨迹(图6a)。不同原子的稳定程度存在差异:部分原子在整个过程中始终保持相同的原子类型,而另一些原子则经历多次类型转变后才达到最终状态。值得注意的是,大多数原子类型在扩散过程最后 20 步趋于稳定,说明原子类型的最终确定主要发生在去噪后期。每个扩散步中原子类型发生变化的平均次数整体呈下降趋势(图6b);早期存在较明显波动,随着去噪逐步接近最终分子结构,这些变化逐渐减少。
该研究还计算了每个去噪步骤中的原子坐标与最终结构之间的 RMSD。与原子类型转变不同,坐标 RMSD 在整个去噪过程中呈现较为稳定且均匀的下降趋势。
为追踪化学键的形成过程,进一步分析了最终结构中成键原子对在各去噪步骤中的原子间距离。约在第 25 步左右,这些原子间距离开始持续缩短,提示化学键形成及后续键结构优化主要从这一阶段开始。此外,该研究还根据每个扩散步骤中的原子间距离重新判定化学键。去噪早期,由于原子最初从高斯噪声中采样,彼此之间可能随机处于较近距离,因此化学键的形成与断裂十分频繁。
在第 40–90 步之间,化学键变化保持在较低且相对稳定的波动水平;进入最后 50 步后,化学键变化基本停止,表明分子的成键模式已经趋于稳定。
最后,对第 0、25、50、75 和 100 步等关键扩散阶段的整体构象演化进行了可视化(图6f)。可以清晰观察到分子由最初的随机原子坐标逐步演化为最终化学有效的三维结构。尤其是在第 75 步之后,原子坐标已经相对稳定,后续步骤主要用于对原子位置进行精细调整,并进一步修正原子类型。这一结果与前述原子类型转变和化学键动态分析一致,均表明分子结构在扩散后期逐渐进入稳定和精修阶段。
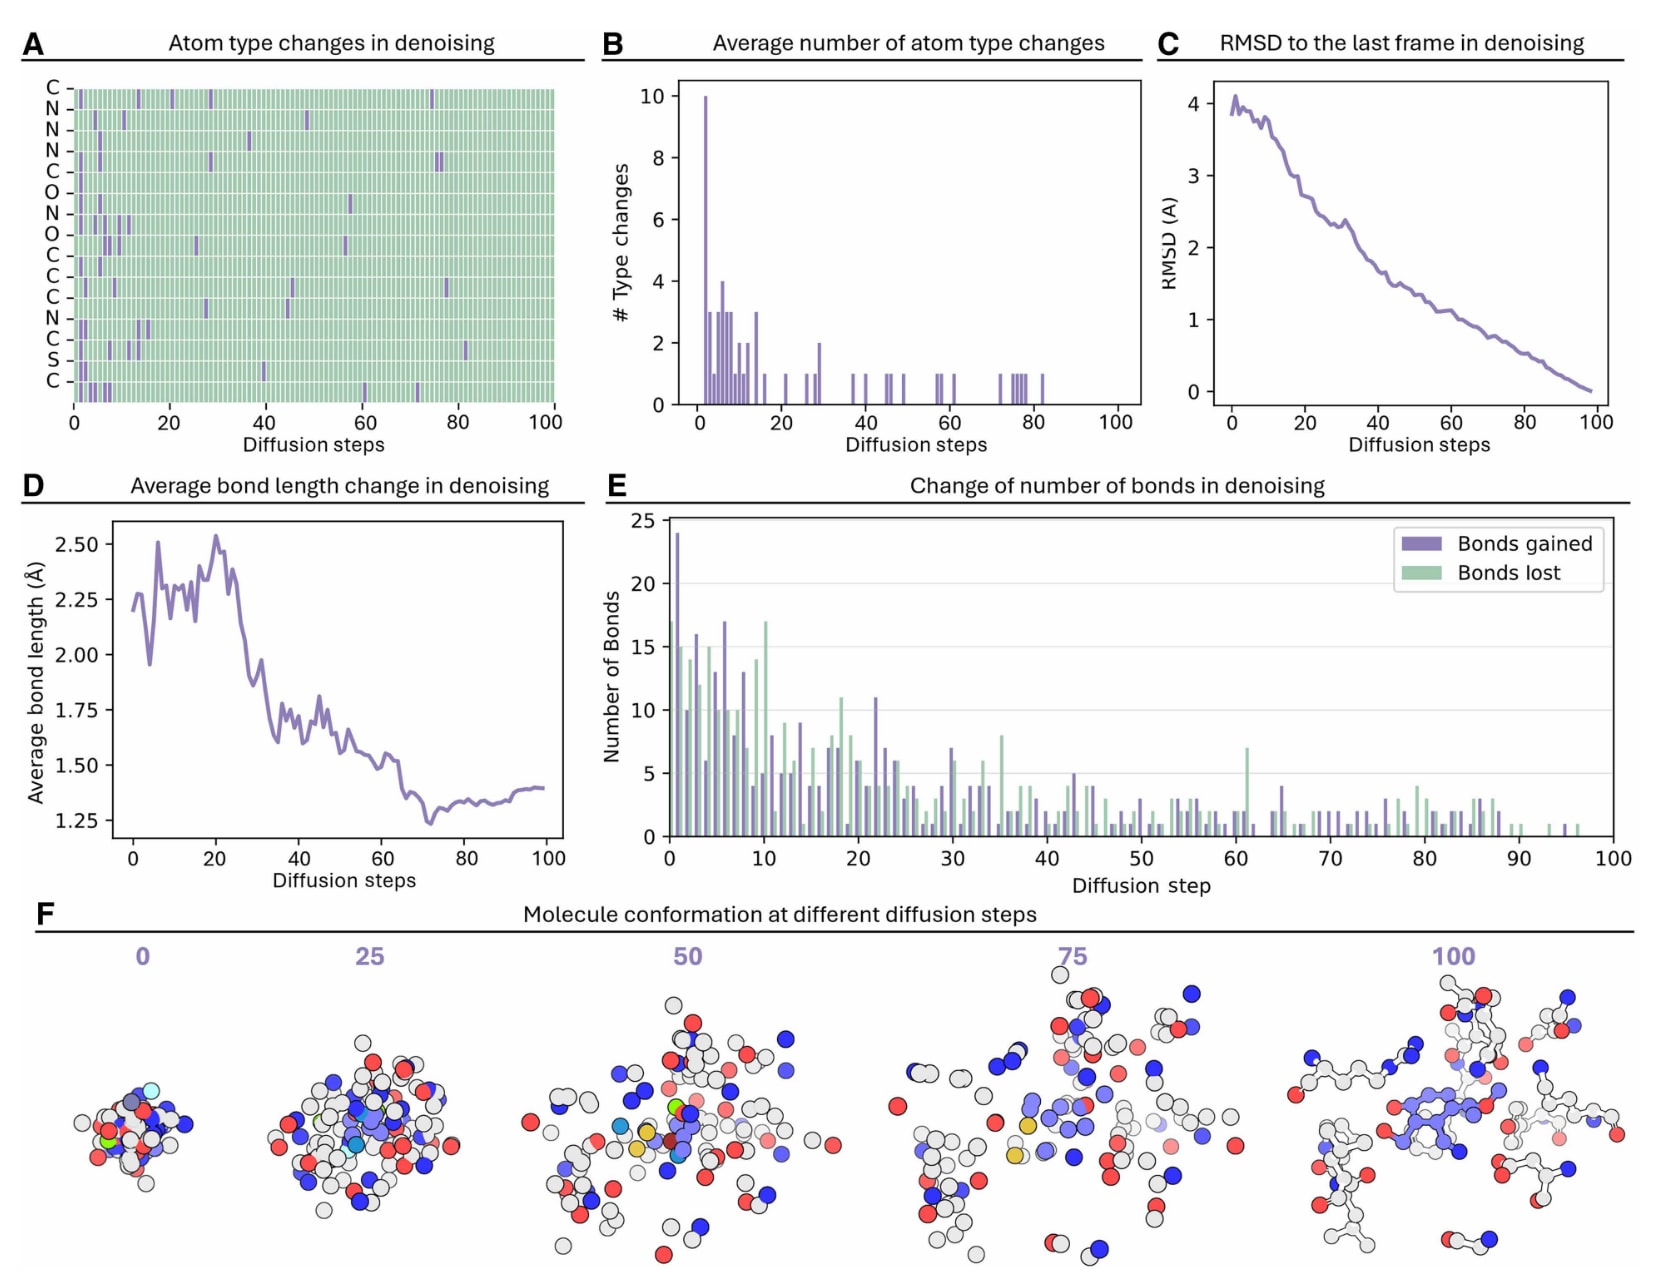
图6|PDB 3JQA 分子生成过程中去噪阶段的结构演化与构象变化。 a,单个原子在不同扩散步骤中的原子类型变化,其中紫色表示原子类型发生转变,绿色表示原子类型保持稳定。b,每个扩散步骤中原子类型变化次数的平均值。c,去噪过程中各步骤结构相对于最终结构的 RMSD。d,去噪过程中平均键长变化的演化。e,各扩散步骤中化学键形成(紫色)和化学键断裂(绿色)事件的数量统计。f,第 0、25、50、75 和 100 步代表性扩散阶段的分子构象可视化,展示分子从初始随机坐标逐步精修为最终化学有效三维结构的过程。不同颜色的球体表示演化过程中不同的原子类型。
3 讨论
对 YuelDesign 的评估揭示了扩散模型用于分子设计时的若干关键能力与局限。该框架能够生成化学有效且结构稳定的分子,同时保持与药物发现相关的重要性质。官能团分布分析表明,无论是常见官能团还是低频官能团,YuelDesign 均能够保持较为均衡的分布,并在整体上维持与已知配体相似的化学特征。
在基于结构的分子设计中,如何考虑蛋白质口袋柔性是一个关键挑战。DiffSBDD 和 PMDM 等传统方法通常将蛋白口袋视为刚性结构,因此难以捕捉配体结合过程中发生的诱导契合效应和侧链重排。相比之下,YuelDesign 同时生成蛋白质口袋和小分子结构,使蛋白侧链能够在生成过程中动态调整。RMSD 分析显示,生成口袋相对于天然结构仍保持合理构象,其中位 RMSD 为 1.8 Å,与蛋白质–配体结合过程中通常只发生较小构象调整这一特点一致。此前针对 521 对 apo–holo 蛋白结构的分析表明,约 80% 的结构对 RMSD 不超过 1 Å。在蝶呤还原酶 1(3JQA)体系中,YuelDesign 生成的分子能够形成新的极性接触,同时保留关键的
YuelDesign 中的 E3former 架构在 Evoformer 堆叠模块的基础上进行了改造,以支持等变坐标预测。通过联合使用序列特征、成对特征和几何特征,E3former 能够同时对蛋白质原子和配体原子进行建模,并保持其三维空间关系。其等变坐标输出头以旋转和平移等变的方式预测原子位移,从而生成在物理上保持一致的三维结构。单序列处理流程结合三角注意力和三角乘法模块,可以在整个复合物结构中传播结构上下文信息,而无需依赖多序列比对或固定的残基排列顺序。
YuelDesign 采用两类扩散模型协同生成分子:使用 EDM 处理连续原子坐标,使用 D3PM 处理离散原子类型。EDM 通过在噪声注入与信号保留之间进行平衡的去噪过程,逐步优化原子坐标;D3PM 则通过离散类别状态上的马尔可夫过程描述原子类型的演化。EDM 与 D3PM 基于共享的 E3former 特征进行联合训练,使模型能够学习几何结构与原子身份之间的相关关系,从而生成原子类型与局部结构环境相匹配的分子。这种联合建模有助于在生成过程中维持化学有效性、分子连通性,以及配体结构与原子类型之间的一致性。
尽管 YuelDesign 展现出明显优势,但仍存在若干局限。首先,生成分子与天然配体之间的结构相似性虽然高于其他方法,但总体仍然有限,说明庞大的化学空间依然难以被充分探索。其次,由于初始采样阶段缺乏显式化学约束,小环及其他高张力结构基序存在一定程度的过度生成。第三,扩散模型在较大分子上的性能呈下降趋势,其中一个重要原因是分子表示维度随原子数量增加而迅速升高。在当前框架中,每个原子同时由三维坐标和特征向量表示,并且扩散过程需要同时作用于全部原子。随着原子数量增加,输入空间的总维度也随之扩大,使去噪任务更加困难。高维数据可能进一步加剧学习难度,包括收敛速度减慢,以及迭代去噪过程中微小误差不断累积,最终导致大分子的有效性或连通性下降。
一种潜在改进方案是引入**潜空间扩散(latent diffusion)**策略。通过首先将分子映射至更低维的潜空间,模型可以在更加紧凑且结构化的表示空间中执行扩散过程,从而降低有效维度。这可能提高去噪过程的稳定性和可扩展性,尤其适用于较大分子,同时保留关键的结构和化学信息。后续研究可进一步探索潜空间扩散框架,以改善高维大分子体系的生成质量。
最后,对去噪过程的分析进一步揭示了扩散模型逐步优化分子结构的方式。原子类型转变、化学键动态变化以及整体构象调整均表现出较为系统的结构精修过程。原子坐标在第 75 步之后基本趋于稳定,而后续步骤仍持续对原子位置和原子类型进行精细调整,这表明模型可能采用了一种具有层次性的结构生成过程。对这一机制的理解可为后续模型优化提供依据,例如将原子类型确定与三维坐标精修过程部分解耦,从而进一步提高去噪效率。